
蛋白质组学给肥胖“分班”
肥胖在临床上常被简化为一个体重指数(BMI)数字,但它的生物学面貌远比这复杂。Lim等人[1]利用51 869例英国生物样本库参与者的血浆蛋白质组数据,对肥胖个体进行了无监督聚类分析。
在较低聚类分辨率(res=0.4)下,男女肥胖个体均可分为两个主要亚型——心血管代谢有利型与不利型。提高分辨率(男性res=0.6,女性res=0.7)后,男性出现4个亚型、女性出现5个亚型。其中,男性一个亚型以全身脂肪高、不良脂肪分布、肝脂肪和肌肉脂肪浸润增加为特征,糖尿病、肝癌和NAFLD风险最高;另一个亚型尽管总体肥胖程度相似,心血管疾病风险却显著升高,提示不同的潜在生物学机制。女性则识别出一个由体脂升高和显著肌肉脂肪浸润驱动的高风险亚型,并与心血管代谢风险增加相关。区分这些亚型的蛋白包括瘦素、脂蛋白脂酶、神经蛋白聚糖、胃饥饿素、肾素等,代表跨多个组织的多样生物通路。该研究提示,血浆蛋白质组学有望帮助识别心血管代谢风险最高的肥胖个体,支持更精确分层和靶向干预策略的潜在效用。
BMI和腰高比“不一致”背后的蛋白质信号
BMI和腰高比(WHtR)衡量的是肥胖的不同侧面,二者对肥胖定义的不一致可识别相对中心性与全身性脂肪分布的个体。而蛋白质组学可揭示与脂肪分布相关的蛋白和通路。
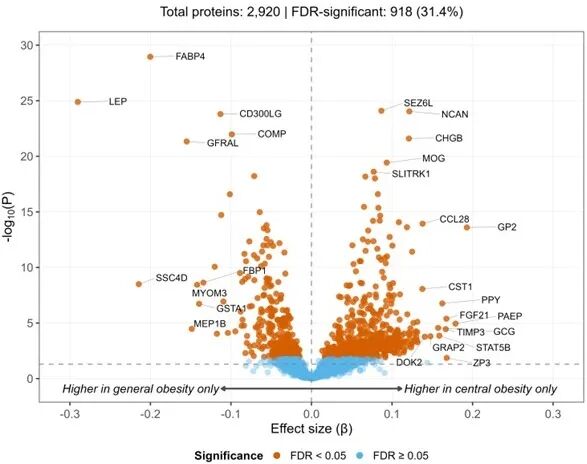
Xia等人[2]通过比较“单纯全身性肥胖”(BMI≥30 kg/m2但WHtR正常)和“单纯中心性肥胖”(WHtR≥0.582但BMI正常)两组各2686例参与者,发现918种蛋白(占检测总数2920种的31.4%)在两组间存在差异。富集分析显示,胰腺分泌通路是最显著的富集通路;在效应量最高的前20种蛋白中,9种与胰腺或消化相关(如GP2、GCG、PPY、FGF21)。尽管调整后胰腺质子密度脂肪分数(PDFF)在两组间无显著差异(14.0% vs. 13.9%),但它对前20种蛋白中的15种显示显著间接效应(介导总效应的5%~25%),提示异位胰腺脂肪可能参与中心性肥胖相关的全身内分泌和代谢紊乱。
1型糖尿病中心性肥胖的独特印记
1型糖尿病(T1DM)患者面临不成比例的心血管代谢疾病负担,中心性肥胖正成为胰岛素抵抗的原因之一,增加心血管疾病风险。Mutter等人[3]利用FinnDiane研究队列,对793例T1DM成人测量了5420种血清蛋白。中心性肥胖定义为腰高比≥0.5(N=463)。
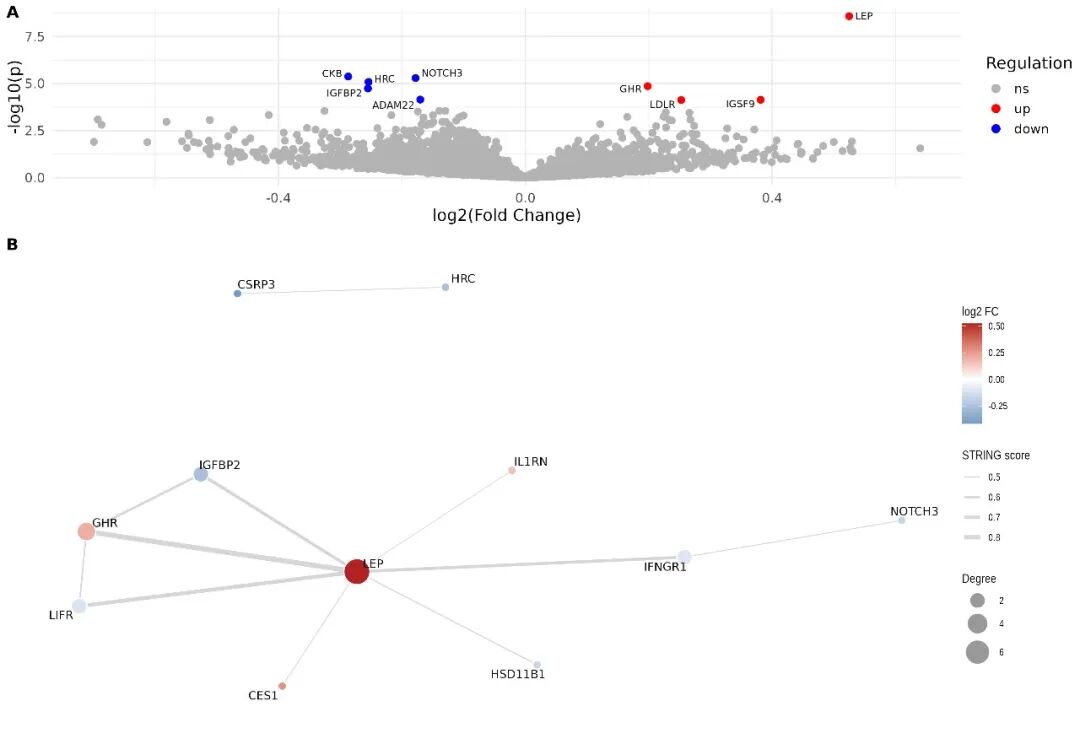
在BMI之外,451种蛋白与中心性肥胖名义相关,多重检验校正后9种保持显著,包括LEP、GHR、LDLR和HRC。与无糖尿病人群(N=4203)相比,31种已知相关蛋白中仅4种重叠,仅LEP在多重检验校正后仍显著。富集分析显示胆固醇稳态、脂肪酸代谢和脂肪生成通路显著上调,肌生成通路显著下调。蛋白互作网络分析揭示了一个以LEP为中心的模块(与肥胖信号相关)和一个含HRC和CSRP3的模块(提示心脏结构重塑和肌肉胰岛素抵抗)。结果表明,T1DM与非糖尿病人群中心性肥胖的蛋白质组信号既有共享也有差异。
胰周脂肪组织的蛋白质组画像
内脏脂肪组织与2型糖尿病(T2DM)密切相关,但胰周脂肪组织(PPAT)的分子特征在人类中此前鲜有报道。Suleiman等人[4]从52例器官捐献者中获取PPAT样本,涵盖正常体重非糖尿病、超重/肥胖非糖尿病、正常体重T2DM和超重/肥胖T2DM四组。
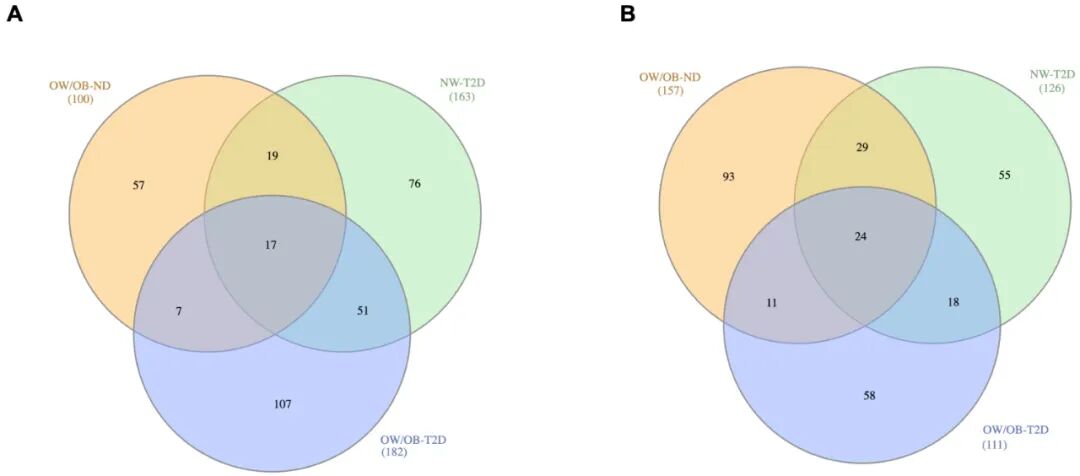
通过LC-MS/MS共鉴定出4827种蛋白,其中1595种差异表达。组间分析显示,超重/肥胖非糖尿病组有100种蛋白上调、157种下调;正常体重T2DM组有163种上调、126种下调;超重/肥胖T2DM组有182种上调、111种下调。三组间既有各自特有的差异蛋白,也存在一定共享蛋白,例如,超重/肥胖非糖尿病组与正常体重T2DM组有36种上调蛋白和53种下调蛋白共有。该研究为理解PPAT在超重/肥胖和T2DM中的作用提供了初步蛋白质组学数据。
空肠微生物群在糖尿病前的“先兆变化”
大多数肠道微生物研究使用粪便样本作为替代,但营养吸收和肠促胰素产生的主要场所——小肠却很少被探索。Makour等人[5]收集了627例接受减重手术并进行代谢表型分析者空肠内容物液体,使用针对低生物量优化的方案提取微生物DNA。
微生物DNA绝对定量显示,细菌范围为<2~5.6×10⁷基因组拷贝(GC)/ml。T2DM个体的细菌载量显著高于非T2DM者(中位数1410 vs. 902,P=0.0014)。按临床亚表型进一步分析,严重胰岛素抵抗型糖尿病(SIRD)的细菌DNA丰度显著高于轻度肥胖相关聚类(中位数9908 vs. 1362,P=0.039)。细菌α多样性显示,糖尿病前期和T2DM参与者的Shannon多样性指数均低于正常血糖调节者(分别P=0.001和P=0.013),而均匀度无显著差异,提示多样性丧失源于细菌群落中大量微小变化的累积。在T2DM亚表型中,SIRD聚类的Pielou均匀度指数更低(P=0.004),固氮菌属、甲基杆菌属和链球菌属的相对丰度增加。这是首个大规模人类空肠微生物群数据。
心外膜脂肪的脂质信号与心脏风险
心外膜脂肪组织(EAT)紧贴心脏,在肥胖状态下以促炎介质分泌增加为特征,但其分泌组的脂质组成此前表征不足。Calderoni等人[6]从接受心脏手术的肥胖和非肥胖受试者(每组n=15)EAT中分离成熟脂肪细胞,分析其分泌组。同时将人心肌祖细胞暴露于分泌组24小时,以评估心脏毒性。
脂肪酸组成的主成分分析显示,肥胖和非肥胖组沿PC1显著分离(方差40.1%;PERMANOVA P=0.003),油酸和棕榈油酸在肥胖组载荷最高,棕榈酸、硬脂酸、花生四烯酸和DHA在非肥胖组载荷最高。与非肥胖组相比,肥胖组总单不饱和脂肪酸(MUFA)增加(约47% vs. 约43%,P<0.05),关键脂肪生成酶硬脂酰辅酶A去饱和酶(SCD)活性升高,SCD-18替代指数(C18:1/C18:0,P<0.05)和SCD-16替代指数(C16:1/C16:0,P<0.001)均升高,表明棕榈酸转化通路优先过度激活。肥胖组还呈现更高的n-6/n-3比值(P<0.05),提示促炎状态增强。Spearman相关分析显示,仅在肥胖组中,SCD-16替代指数与花生四烯酸(r=-0.88)和DHA(r=-0.87)强负相关,与棕榈油酸正相关(r=0.85),这些关联在非肥胖组中不存在。该研究将肥胖EAT确定为心脏微环境不利脂质信号的潜在来源。
这6项研究从不同组织器官和不同组学层面,勾勒出肥胖的复杂生物学面貌。蛋白质组学提示肥胖并非单一疾病,而是包含多种代谢风险的亚型集合;基于BMI与WHtR不一致性的分析进一步区分了中心性与全身性肥胖的蛋白质组差异,并指向胰腺脂肪的潜在角色;T1DM人群的中心性肥胖信号部分与普通人群共享、部分独特,提示疾病特异性干预的必要性;胰周和心外膜等内脏脂肪组织的蛋白质组和脂质组特征,揭示了它们作为内分泌器官在代谢紊乱中的功能;空肠微生物群数据则填补了肠道近端微生物研究的空白,提示微生物多样性丧失在糖尿病前期即已出现。这些工作为未来更精细的肥胖分层和靶向干预提供了依据。
参考文献
1. A. Lim, et al. Proteomic-driven clustering of obesity subtypes. EASD2026; OP 07.
2. Y. Xia, et al. Distinct proteomic signatures of central versus general obesity revealed by anthropometric discordance. EASD2026; OP 07.
3. S. Mutter, et al. Large-scale serum proteomics of central obesity in type 1 diabetes. EASD2026; OP 07.
4. M. Suleiman, et al. Proteome profiling of peri-pancreatic adipose tissue in type 2 diabetic subjects and the effects of overweight/obesity. EASD2026; OP 07.
5. A. Makour, et al. The human small intestinal microbiota exhibits a specific signature in people with type 2 diabetes and high-risk subphenotypes. EASD2026; OP 07.
6. I. Calderoni, et al. Lipidomic profiling of epicardial adipose tissue secretome suggests stearoyl-CoA desaturase dysregulation in obese patients. EASD2026; OP 07.
本文仅供医疗卫生专业人士了解最新医药资讯参考使用,不代表本平台观点。该等信息不能以任何方式取代专业的医疗指导,也不应被视为诊疗建议,如果该信息被用于资讯以外的目的,本站及作者不承担相关责任。

我要留言